Tema 3 Genética cuantitativa de la conducta | El Taller Clandestino de Tuning de Alta Competición: Telemetría, Motores y Performance Conductual
📌 Ficha Técnica y Guía de Repaso
Asignatura: Psicobiología
Ver más / Colapsar
Glosario de Términos
Psicobiología Primer Parcial
Tema 3: Genética cuantitativa de la conducta
Aislamiento de la covarianza genotipo-ambiente: Ventaja técnica de los estudios de adopción al evitar la confusión entre el patrimonio genético transmitido y el entorno familiar de crianza.
Alelos aditivos: Variantes génicas cuyo valor numérico individual se suma linealmente al de otros alelos para contribuir al valor fenotípico cuantitativo total.
Ambiente empobrecido (restringido): Entorno de crianza privativo y reducido que anuló las ventajas genéticas de aprendizaje que presentaban las ratas «listas».
Ambiente enriquecido: Entorno de crianza con jaulas amplias y abundancia de estimulación que compensó totalmente el déficit genético de las ratas «torpes».
Aumento de rMZJ con la edad: Incremento de la correlación en el CI entre gemelos monocigóticos criados juntos, pasando de 0.68 en lactantes a 0.83 en la adolescencia y adultez.
Cálculo del Valor Genotípico: Resultado numérico de sumar las dosis génicas de cada alelo multiplicadas por sus respectivos valores aditivos en los loci implicados.
Campana de Gauss del CI: Distribución normal de los Cocientes de Inteligencia en la población con media de 100 y desviación típica de 15 utilizada para evaluar percentiles.
Compensación de dosis génica: Mecanismo biológico de inactivación de un cromosoma X en hembras para equiparar la expresión efectiva de genes a la dosis única de los machos.
Componente ambiental residual (e): Factor individual que completa la varianza fenotípica total en las ecuaciones de descomposición de la heredabilidad (H^2 + c^2 + e^2 = 1).
Concordancia genética gemelar: Porcentaje o proporción de parejas de gemelos en las que ambos coinciden en presentar el diagnóstico clínico respecto al total de parejas estudiadas.
Contribución porcentual pequeña de los QTL: Característica de los genes aditivos en rasgos complejos según la cual cada alelo individual explica solo una minúscula fracción de la varianza fenotípica.
Correlación de hermanos adoptivos (rADOPT): Estimación directa del ambiente compartido (c^2) obtenida mediante la correlación fenotípica de hijos adoptivos criados juntos sin parentesco genético.
Correlación padres adoptivos – hijos adoptados: Medida de la influencia del ambiente compartido (c^2) sobre un rasgo, la cual arroja valores cercanos a cero (r ≈ 0.04) para el CI en adultos.
Correlación padres biológicos – hijos adoptados: Medida que refleja la heredabilidad al estimar el parecido entre los adoptados y sus progenitores biológicos con los que no compartieron ambiente.
Correlación rDZJ: Coeficiente de correlación fenotípica observado entre gemelos dicigóticos criados en un mismo ambiente compartido.
Correlación rMZJ: Coeficiente de correlación fenotípica observado entre gemelos monocigóticos que han sido criados en el mismo entorno familiar.
Correlación rMZS: Coeficiente de correlación fenotípica entre gemelos monocigóticos criados por separado que proporciona una estimación directa de H^2.
Cuatrillizas Genain: Caso clásico de concordancia gemelar en esquizofrenia en el que cuatro gemelas idénticas desarrollaron la patología con diferente nivel de severidad.
Definición de ambientalidad compartida (c^2): Proporción de la varianza fenotípica resultante de factores ambientales comunes vividos por los individuos criados en el mismo hogar.
Definición de ambientalidad específica (e^2): Proporción de la varianza fenotípica explicada por vivencias singulares no compartidas por otros miembros de la familia y por el error de medida.
Definición de Diferencial de Selección (S): Medida de la intensidad de la selección calculada como S = M’ – M, que representa la distancia entre la media de los reproductores y la de la población.
Definición de Dosis Génica: Número de copias de un alelo concreto que un individuo presenta en su genotipo para un locus genético determinado (0, 1 o 2).
Definición de QTL: Región específica de un cromosoma que alberga uno o varios genes aditivos asociados a la variación de un rasgo cuantitativo continuo.
Definición de Respuesta a la Selección (R): Ganancia o cambio fenotípico medio observado en la descendencia de los reproductores seleccionados, expresado como R = M» – M.
Desaparición de la heredabilidad por el ambiente: Fenómeno por el cual la variabilidad genética del rasgo sólo se expresa en ambientes normales o estándar, enmascarándose en ambientes extremos.
Diseño de adopción: Estrategia metodológica en humanos que separa los factores genéticos de los ambientales al evaluar semejanzas con padres biológicos versus padres adoptivos.
Dosis génica heterocigota: Estado genotípico en el que la dosis de un alelo específico es igual a 1 al estar acompañado de un alelo diferente en el mismo locus.
Dosis génica homocigota: Estado genotípico en el que la dosis de un alelo específico es igual a 2 por presentar dos copias idénticas en organismos diploides.
Efecto de c^2 en gemelos dicigóticos: Factor ambiental común que incrementa la semejanza entre gemelos DZ criados juntos por encima de la mitad de la heredabilidad aditiva.
Efecto de dominancia intralocus: Desviación del valor genotípico lineal esperado producida cuando la presencia de un solo alelo dominante produce el efecto fenotípico completo.
Efecto de elevación media en adopción: Fenómeno por el cual el ambiente favorable de la familia adoptiva puede elevar el CI promedio de los hijos sin alterar su variabilidad de origen genético.
Efecto multiplicador aditivo: Uso cuantitativo de la dosis (0, 1 o 2) para multiplicarla por el valor aditivo individual de un alelo en el cálculo del valor genotípico.
Estatus socioeconómico y expresión génica: Condición ambiental en la que un nivel socioeconómico más elevado proporciona oportunidades estimulares óptimas que permiten manifestar plenamente la heredabilidad del CI.
Estudios de Asociación Genómica Amplia (GWAS): Estrategia de mapeo genético a gran escala que analiza multitud de sujetos para localizar QTLs correlacionados con un rasgo o fenotipo.
Experiencias no compartidas: Acontecimientos únicos vividos de manera individual por un hermano o gemelo (como accidentes, enfermedades particulares o grupo de pares).
Experimento de Cooper y Zubek: Estudio de 1958 sobre el aprendizaje de laberintos en ratas «listas» y «torpes» bajo tres condiciones ambientales, demostrando la interacción genotipo-ambiente.
Experimento de E.M. East: Investigación realizada en 1920 sobre la longitud de la corola en plantas de tabaco para calcular empíricamente las varianzas total, ambiental y genética.
Experimento de Johannsen: Estudio de selección artificial realizado en 1903 con alubias Phaseolus para cuantificar el efecto de la selección sobre el peso de las semillas.
Experimento de Nilsson-Ehle: Investigación histórica de 1908 con granos de trigo que demostró que rasgos cuantitativos continuos se rigen por las leyes de Mendel mediante genes aditivos.
Experimento de Tolman y Tryon: Programa de selección artificial en ratas para la capacidad de aprendizaje de laberintos que logró separar razas «listas» y «torpes» en ocho generaciones.
Factor g (Inteligencia General): Construcción cognitiva general que presenta una elevada varianza genética de tipo aditivo que incrementa su heredabilidad con el paso de los años.
Fenotipos dicotómicos poligénicos: Trastornos psiquiátricos que se diagnostican categóricamente (sano/enfermo) pero cuya susceptibilidad subyacente presenta una distribución cuantitativa continua.
Fórmula de ambiente compartido de Falconer: Ecuación c^2 = 2(rDZJ) – rMZJ que permite calcular la proporción de varianza fenotípica explicada por las experiencias familiares comunes.
Fórmula de heredabilidad de Falconer: Ecuación H^2 = 2(rMZJ – rDZJ) empleada para estimar la heredabilidad en sentido amplio eliminando teóricamente la varianza del ambiente compartido.
Fórmula de heredabilidad realizada: Ecuación H^2 = R / S que determina la heredabilidad de un rasgo mediante el cociente entre la respuesta a la selección y el diferencial de selección.
Fórmula de la ambientalidad específica: Ecuación e^2 = 1 – rMZJ que permite calcular la varianza ambiental no compartida deduciéndola de la correlación de gemelos monocigóticos criados juntos.
Frecuencia 1/16: Proporción esperada en la F2 para los fenotipos extremos (sin alelos aditivos o con todos los alelos aditivos) en una herencia poligénica de dos loci.
Gen MATP: Locus de rasgo cuantitativo identificado en la especie humana con variantes típicamente aditivas respecto a la pigmentación cutánea.
Gen MC1R: Locus del receptor de melanocortina 1 ubicado en 16q24.3, cuyas variantes aditivas reducen la eumelanina dando lugar a piel más clara.
Grado de coincidencia ambiental (rcc): Coeficiente estadístico utilizado en los diagramas de Falconer para representar la proporción en que dos parientes comparten el mismo entorno familiar.
Granos de trigo de Nilsson-Ehle: Modelo biológico en el que dos genes aditivos con dos alelos cada uno producen una gradación continua del color del grano desde blanco hasta rojo intenso.
Herencia intermedia aditiva: Modelo cuantitativo en el que el valor genotípico del heterocigoto es exactamente igual al promedio de los valores de ambos homocigotos.
Heterocigoto en dominancia completa: Genotipo en el cual una dosis génica igual a 1 para el alelo dominante produce un valor genotípico idéntico al del homocigoto con dosis 2.
Límite de selección: Punto de agotamiento de la variabilidad genética en una población seleccionada, tras el cual la respuesta a la selección se vuelve nula.
Media de la descendencia (M»): Promedio aritmético del rasgo cuantitativo obtenido en la generación filial nacida del grupo de reproductores seleccionados.
Media de la población original (M): Promedio aritmético inicial de un rasgo fenotípico en la población general antes de seleccionar a los reproductores.
Media de los reproductores seleccionados (M’): Promedio aritmético del rasgo fenotípico de los individuos elegidos para actuar como progenitores en un programa de cría selectiva.
Nicotiana longiflora: Especie de planta de tabaco utilizada por E.M. East como modelo experimental para demostrar la heredabilidad cuantitativa de la longitud de la corola.
Phaseolus: Género vegetal de alubias comestibles empleado por Wilhelm Johannsen para aislar empíricamente el diferencial de selección.
Proporción 1:4:6:4:1: Distribución de frecuencias fenotípicas en la F2 para dos genes aditivos dialélicos (AaBb x AaBb) que se aproxima a una curva normal.
Reducción de c^2 con el desarrollo: Tendencia empírica de la ambientalidad compartida a disminuir hasta valores insignificantes en la inteligencia adulta a medida que aumenta la autonomía personal.
Regresión progenitor-descendiente: Método estadístico en estudios familiares para estimar la heredabilidad en sentido estricto a partir de la covarianza entre padres e hijos.
Riesgo familiar proporcional: Aumento progresivo de la probabilidad de padecer esquizofrenia o trastorno bipolar al incrementarse el grado de parentesco genético con el afectado.
Selección activa del ambiente: Proceso ontogenético por el cual los individuos adultos buscan y construyen activamente entornos alineados con sus propensiones genéticas innatas.
Selección artificial (cría selectiva): Procedimiento reproductivo basado en seleccionar progenitores con valores fenotípicos extremos determinados por la varianza aditiva.
Tabla de Punnett poligénica: Matriz que permite determinar los 16 genotipos posibles de la F2 y calcular el grado de pigmentación sumando las dosis de alelos aditivos.
Umbral de riesgo (Liability threshold): Límite cuantitativo acumulativo de factores de riesgo poligénicos que, al ser sobrepasado, determina la manifestación clínica de una enfermedad discreta.
Valor aditivo del alelo: Unidad de contribución cuantitativa individual (ej. A=1, a=0) que se suma al fenotipo total según la dosis génica del organismo.
Varianza ambiental (VA): Fracción de la varianza fenotípica resultante de las diferencias en las condiciones ambientales a las que están expuestos los individuos.
Varianza de interacción Genotipo-Ambiente (VGA): Fracción de la varianza fenotípica que ocurre cuando la respuesta a las variaciones ambientales difiere en función del genotipo específico del individuo.
Varianza fenotípica (VT): Suma total de la varianza genética y la varianza ambiental que representa la variabilidad observada de un rasgo cuantitativo en una población.
Varianza genética (VG): Fracción de la varianza fenotípica debida a las diferencias genéticas globales entre los individuos de una población.
Varianza genética aditiva (VGa): Componente de la varianza genética resultante exclusivamente de la suma directa de los efectos aditivos de los alelos individuales.
Varianza no genética de la inteligencia: Fracción de la variabilidad del CI (aprox. 25%) que responde a factores de desarrollo personal y vivencias exclusivas de cada individuo.
Varianza por dominancia (VGd): Componente de la varianza genética causado por las interacciones intralocus entre los alelos de un mismo locus.
Varianza por epistasia (VGi): Componente de la varianza genética originado por las interacciones interloci entre alelos situados en genes distintos.
Contenido estructurado: Resumen técnico para examen + Lectura conceptual en tono cebra + Test de autoevaluación.
Ayer vi a un tipo gritarle al asfalto porque su coche no pasaba de ochenta.
El firme estaba seco. Las ruedas eran nuevas.
Pero bajo el capó llevaba un motor con tres cilindros oxidados y la potencia de un cortacésped triste.
Y aun así, la culpa era de la lluvia que ni siquiera caía. Si estuviéramos en Psicología Social comentaríamos su curioso sistema de atribución causal. Pero eso es otra historia y ya ha sido contada en otra ocasión.
En la vida nos pasa exactamente igual.
Nos encanta pensar que si fallamos en la pista es porque el mundo nos pone curvas resbaladizas.
La realidad es bastante más fría y se mide en caballos de potencia reales.
Imagínate meter tu rendimiento personal en el banco de pruebas de un taller de tuning de élite. Las ruedas giran a mil revoluciones. La pantalla escupe una cifra exacta. Eso es lo que rindes en la pista.
Algunos nacen con un V12 biturbo montado de fábrica. Otros vienen con la mecánica de un utilitario sin dirección asistida.
El problema es que la mayoría confunde lo que hay estampado en los planos de ingeniería con lo que el coche responde cuando pisa el acelerador.
Ahí empieza el desajuste entre la mecánica que trajiste de serie y la gasolina barata que le echas en la gasolinera del barrio.
¿Quieres saber cuántos caballos de tu rendimiento son mérito de tu motor y cuántos se pierden por el mal agarre del circuito?
Abre el capó. Vamos a destripar la máquina.
Bienvenidos a Diario de una Cebra. Hoy he decidido ponerme el mono lleno de grasa de jefe de taller mecánico.
No es que haya dejado la psicología para montar un taller clandestino.
Que podría ser en cualquier momento.
Es un truco narrativo.
Adopto personajes para meterte todo este tocho de teoría académica tratando de que no caigamos en coma inducido.
Prometí abrir el capó y lo voy a cumplir al milímetro.
Analizaremos las piezas que venían montadas de fábrica en el bloque motor.
Calcularemos la dosis génica y el valor genotípico para medir la potencia real en el banco de pruebas.
Utilizaremos la regla matemática de dos n más uno para contar cuántos modelos de coche pueden salir de la línea de montaje.
Después sacaremos la telemetría avanzada.
Explicaré la diferencia técnica entre heredabilidad en sentido amplio y heredabilidad en sentido estricto.
Aplicaremos las fórmulas de Falconer comparando dos coches gemelos rodando en circuitos distintos.
Calcularemos el diferencial de selección y la respuesta a la selección en experimentos de cría selectiva como si estuviéramos preparando la cantera de pilotos para la próxima temporada.
Por último, probaremos cómo la interacción genotipo-ambiente altera el agarre según la calidad del asfalto, diseccionando la ambientalidad compartida, la ambientalidad específica, los loci de rasgo cuantitativo y el umbral de riesgo ante averías graves de la máquina.
Ajusta el cinturón de cuatro puntos. Ponte los tapones para el ruido. Arrancamos.
CONCEPTOS BÁSICOS DE GENÉTICA CUANTITATIVA | Piezas Sueltas vs. El Banco de Potencia V12
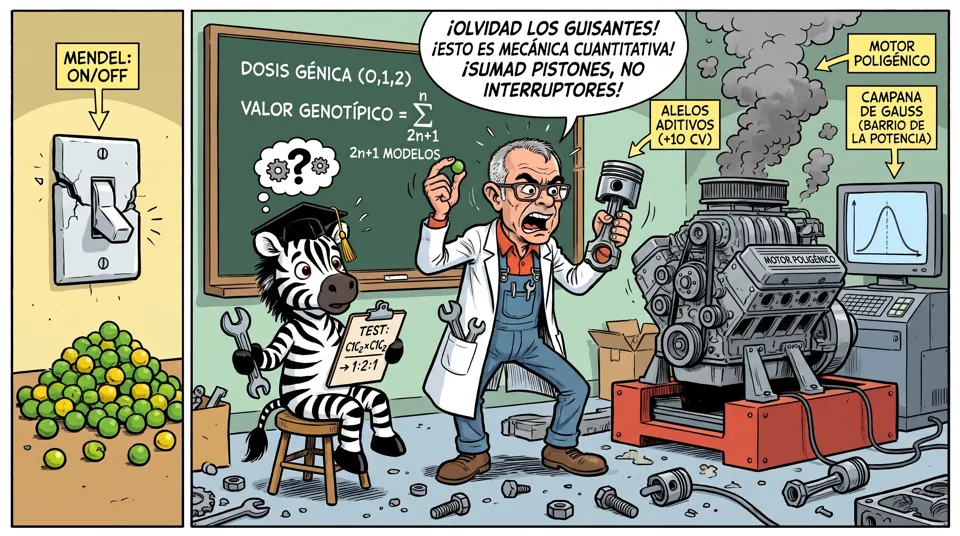
Nuestro querido amigo Mendel nos hizo creer que la biología funciona como un interruptor de la luz. O el coche arranca, o se va al desguace.
O las semillas de guisante son verdes, o son amarillas. Sin término medio. Eso es un rasgo cualitativo o discreto.
Un solo gen decide si llevas alerón de plástico o no lo llevas.
Es la mecánica monogénica: fácil de entender, pero inútil cuando pisas el acelerador en el mundo real.
Porque en el taller de la vida, la potencia no es un botón de encendido o apagado.
Si metes un coche en el banco de pruebas, el rodillo no te dice «es rápido» o «es lento».
Te escupe una cifra continua: doscientos caballos, doscientos uno, trescientos cincuenta. Eso es un rasgo cuantitativo. Un número
No depende de una sola palanca mágica, sino de decenas de pequeñas piezas sumando fuerza bajo el capó. Es la genética poligénica.
Aquí es donde entran los alelos aditivos.
Piensa en ellos como pistones extra de diez caballos cada uno.
Si tu genotipo monta cuatro de estos pistones, ganas cuarenta caballos. Si monta dos, ganas veinte.
Cada pieza suma su aporte al rendimiento final sin anular a las demás.
A la cantidad exacta de veces que una pieza específica aparece montada en tu bloque motor, la llamamos Dosis génica.
Como ya aprendimos en el tema anterior, somos organismos diploides y recibimos dos copias de cada componente, una del taller paterno y otra del materno, esta dosis solo puede ser cero, uno o dos.
O no tienes el pistón, o tienes una copia, o tienes el juego completo.
Pero claro, contar piezas no te sirve de nada si no sabes cuánto empuja cada una.
Si multiplicas esa dosis por la potencia que aporta cada alelo aditivo y sumas todos los componentes, obtienes el Valor genotípico.
Si llevas dos copias de un pistón que aporta diez caballos y dos copias de un turbo que aporta cincuenta, tu valor genotípico teórico es de ciento veinte caballos. Tan simple como una suma en la factura de la revisión.
Ahora bien, ¿cuántos modelos de coche con distinta potencia podemos armar combinando estas piezas? Para averiguar el número de variantes fenotípicas cuando tenemos ‘n’ genes aditivos con dos opciones cada uno, aplicamos la Fórmula dos n más uno.
Si manejamos dos genes aditivos, la ecuación es dos por dos más uno. Cinco clases de motor.
Desde el chasis pelado sin caballos adicionales hasta la versión monstruosa con cuatro pistones de alto rendimiento.
En cuanto pasas a diez o veinte genes, la curva de potencia en la población ya no muestra barras separadas: se convierte en una curva suave y continua.
La famosa Campana de Gauss.
Esta la conozco bastante bien, tiene un barrio, el Barrio del Prejuicio Envidioso, dejado de la mano de Dios donde apenas hay servicios públicos, el camión de la basura en lugar de recogerla la suelta allí y donde acuden vecinos de otros barrios cuando tienen un problema que no pueden resolver.
¿Por qué tu rendimiento no se reduce a ser listo o tonto, alto o bajo?
Porque la potencia real no la decide un único gen milagroso, sino la suma acumulativa de múltiples alelos aditivos que configuran tu valor genotípico en una escala continua.
Hagamos parada para repasar un par de preguntas de las que suelen caer en los test.
En una especie de primates, el nivel basal de cortisol está determinado por un gen con dos alelos: C1 y C2.
Cada copia del alelo C1 contribuye con +3 unidades de cortisol, mientras que el alelo C2 aporta 0 unidades.
El nivel fenotípico de cortisol según el total de unidades es el siguiente: 0 unidades: bajo nivel de cortisol;
3 unidades: nivel moderado de cortisol;
6 unidades: nivel alto de cortisol.
Si cruzas dos individuos con genotipo C1C2, ¿cuál será la proporción esperada de niveles basales de cortisol en la descendencia?:
Pues nada, Cuadradito de Punnet de los que vimos en el tema anterior.
Y nos da que la descendencia será de un homocigoto C1C1, dos hererocigotos C1C2 y un homocigoto C2C2.
El C1C1 tendrá seis unidades de cortisol (3+3)
Cada uno de los heterocigotos tendrá 3 unidades de cortisol y el homocigoto tendrá cero unidades.
Respuesta correcta para el examen: 1 individuo con 0 unidades : 2 individuos con 3 unidades y 1 individuo con 6 unidades. Rasgo aditivo, el fenotipo refleja la misma proporción del genotipo.
Y otra preguntilla mas: El valor cuantitativo del fenotipo de un individuo se define como:
La combinación del valor genético (incluyendo el aditivo) y el efecto del ambiente sobre el rasgo. El valor fenotípico de un individuo en la genética cuantitativa es el resultado de la contribución conjunta de su valor genotípico y el efecto de las desviaciones ambientales.
IDENTIFICACIÓN DE LOS GENES ADITIVOS: LOCUS DE RASGO CUANTITATIVO | Telemetría GWAS y la Búsqueda del Turbo Oculto
Si tu coche solo tuviera una avería sencilla, como el botón del limpiaparabrisas roto, cualquier aprendiz de taller encuentra el cable suelto en diez segundos. Eso pasa con los rasgos monogénicos. Sabes exactamente en qué página del manual técnico está el circuito.
Pero cuando intentas averiguar por qué un coche saca tres caballos extra respecto a otro en el banco de pruebas, la cosa se complica.
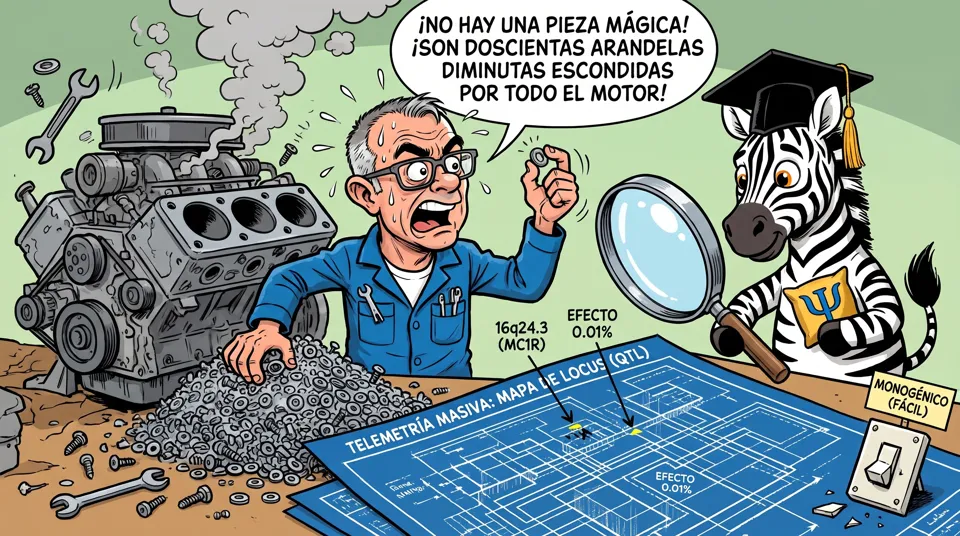
No hay una pieza mágica dorada bajo el capó.
Hay doscientas pequeñas arandelas de titanio repartidas por todo el bloque motor. Cada una aporta una fracción ridícula de par.
Cada alelo individual suele explicar solo una pequeña parte de la variación fenotípica, lo que dificulta asignar un gen concreto a un rasgo.
Para encontrar dónde están escondidas esas piezas diminutas en la cadena de montaje humana, la ciencia inventó la telemetría masiva. Escanean los planos de diez mil coches a la vez mediante estudios de asociación genómica amplia.
Los rasgos cuantitativos son de carácter poligénico, por lo que cada locus individual contribuye con una fracción mínima al fenotipo total, exigiendo tamaños de muestra muy elevados para detectar significación estadística.
Buscan qué microchip coincide con ese medio segundo de ventaja en pista.
La coordenada física exacta dentro del esquema de ingeniería donde se ubica una de estas piezas aditivas es el Locus de Rasgo Cuantitativo.
En los manuales de la UNED lo verás abreviado como QTL, por sus siglas en inglés.
Un ejemplo claro es el gen MC1R, escondido en la coordenada 16q24.3 del manual del cromosoma dieciséis.
En los coches determina el tono del barniz de la carrocería. En ti, la pigmentación de la piel.
El gran problema de estos rastreos gigantescos es el sesgo del mecánico novato. Como cada alelo por separado solo aporta un 0.01 % del rendimiento total, atribuirle a un solo chip toda la victoria en el circuito es una absoluta irresponsabilidad técnica.
Un solo tornillo no te convierte en un vehículo de Fórmula Uno, por mucho que el vendedor del concesionario intente colártelo en el folleto promocional.
¿Por qué resulta tan difícil señalar con el dedo la pieza exacta que te hace rendir más?
Porque los rasgos cuantitativos dependen de multitud de Loci (plural de locus en latín para los que no lo distéis en 2º de BUP) de Rasgo Cuantitativo donde cada alelo aporta un efecto insignificante por sí solo dentro del motor.
GENÉTICA CUANTITATIVA: HEREDABILIDAD | El Motor bajo el Capó vs. El Asfalto de la Pista
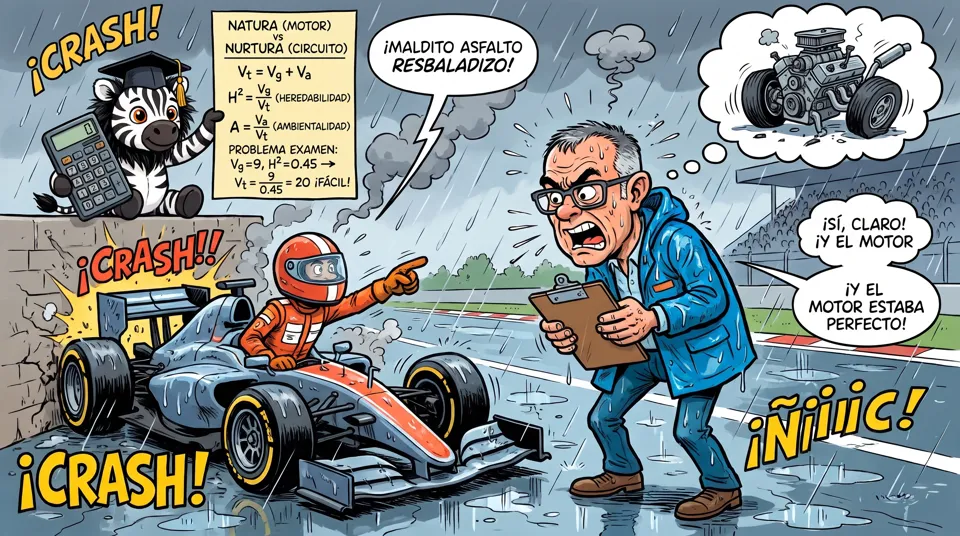
Llegas al circuito un domingo de lluvia. Un piloto se estrella contra el muro en la primera curva. Sale gritando del vehículo y le echa la culpa al asfalto resbaladizo.
El dueño de la escudería lo mira con pena Sabe perfectamente que el coche llevaba la suspensión rota y las llantas dobladas antes de salir del garaje.
Francis Galton acuñó los términos natura y nurtura para referirse a la guerra eterna entre los genes y el entorno.
raducido a nuestro taller: ¿el tiempo por vuelta depende del motor o depende del circuito?
Si pones cincuenta coches a rodar en el mismo trazado, sus tiempos jamás serán idénticos. Verás un abanico de diferencias en la pantalla.
A la dispersión o variabilidad total que mide el cronómetro en toda la parrilla la llamamos Varianza Fenotípica Total.
En los libros la verás escrita como V mayúscula sub t. (V_t)
Esta varianza no es un bloque compacto. Se divide en dos pedazos.
A la fracción de esas diferencias de rendimiento que se debe a que algunos motores llevan mejores piezas de fábrica la llamamos Varianza Genética. Se representa como V sub G. (V_g) Es el impacto puro de la mecánica.
A la otra fracción de las diferencias, esa que depende de si un coche pisó un charco, llevó gasolina barata o sufrió una ráfaga de viento de cara, la llamamos: Varianza Ambiental. Se representa como V sub A. (V_a)
La ecuación es sencilla: V sub T es igual a V sub G más V sub A.
V_t=V_g + V_a
La variación total es la suma del motor más el asfalto. El ambiente es el factor fundamental que interactúa con el genotipo para generar las diferencias observables
Ahora viene la pregunta del millón. Si quieres saber qué porcentaje de la disparidad entre los vehículos se debe al motor y cuánto al circuito, necesitas un índice exacto.
Así que usamos Heredabilidad. Representada como H mayúscula al cuadrado. (H^2)
La heredabilidad es un parámetro poblacional que indica la proporción de la varianza fenotípica total de una población que es atribuible a las diferencias genéticas entre los individuos que la componen.
Como es una proporción, hay que dividir.
Es el cociente entre la varianza genética y la varianza fenotípica total.
Divides V_g entre V_t
H^2 = V_g / V_t
Te da un valor entre cero y uno.
Si la heredabilidad es cero coma ochenta, significa que el ochenta por ciento de las diferencias de velocidad entre los coches de la población se explica por sus motores.
No significa que tu coche tenga un ochenta por ciento de motor y un veinte de gasolina.
Significa que la variación del grupo depende en su mayor parte de la mecánica.
Por si fuera poco la heredabilidad también se puede calcular a partir de las correlaciones fenotípicas entre individuos cuyo parentesco genético es conocido
Complementariamente tenemos la Ambientalidad. Designada con la letra A mayúscula. (A) Es la proporción de la variación debida al ambiente, calculada como V_a dividido entre V_t
A = V_a / V_t
Si mantienes el asfalto idéntico para todos, la varianza ambiental se reduce a cero. En ese caso, la heredabilidad se dispara a uno. Toda diferencia será culpa del motor.
Si clonas el mismo coche cincuenta veces, la varianza genética es cero. Cualquier diferencia en el cronómetro será cien por cien culpa de los baches.
Terminemos con un pequeño problema práctico. Imagina que en el examen, escondidos en alguna historia de terror de esas que les gusta desarrollar, te dicen que la varianza genética de una conducta es 9. Y que la heredabilidad es 0.45. Lo que te piden es calcular la varianza fenotípica total.
Lo que nosotros sabemos es que la Heredabilidad es igual a la varianza genotípica entre la varianza total.
H^2 = V_g / V_t
Si nos piden la total, tenemos que ser capaces de llegar a que la varianza total es igual a la genotípica (V_g) entre la Heredabilidad (H^2).
V_t= V_g / H^2
Cogéis la calculadora que no debéis olvidaros el día del examen y dividís 9 entre 0.45 que os debería dar 20. Marcáis la respuesta correcta y a otra cosa mariposa
CRÍA SELECTIVA Y EXPERIMENTOS DE SELECCIÓN | El Prototipo de Carreras y la Selección de Élite
Y después de echar las cuentas, vamos a ver algunas aplicaciones prácticas.
Llevamos diez mil años haciendo lo mismo en el taller sin saber matemática avanzada.
Queremos coches más rápidos. Seleccionamos los dos bólidos que mejor aguantan las curvas, los ponemos a fabricar piezas juntos y rezamos para que la siguiente generación no salga hecha un trasto.
Es lo que la ganadería y la agricultura llaman cría selectiva o selección artificial.
Desde vacas lecheras hasta ratas de laboratorio entrenadas por psicólogos obsesivos para salir de laberintos.
El truco de este arte ancestral es que solo funciona si el rendimiento depende de piezas aditivas sumables.
Si la ventaja de tu bólido estrella se debe a un ajuste raro de piezas incompatibles que se rompe al clonarlo, la siguiente generación saldrá igual de lenta que la media del desguace.
Seguimos con los numeritos. A la proporción de la variabilidad total que se explica únicamente por el efecto acumulativo de las piezas aditivas puras la llamamos Heredabilidad en sentido estricto.
Se escribe con hache minúscula al cuadrado (h^2)
Es la única heredabilidad que le importa al preparador de la escudería, porque es la única que se transmite de forma predecible a la cantera.
Imagina que tienes una flota de coches viejos.
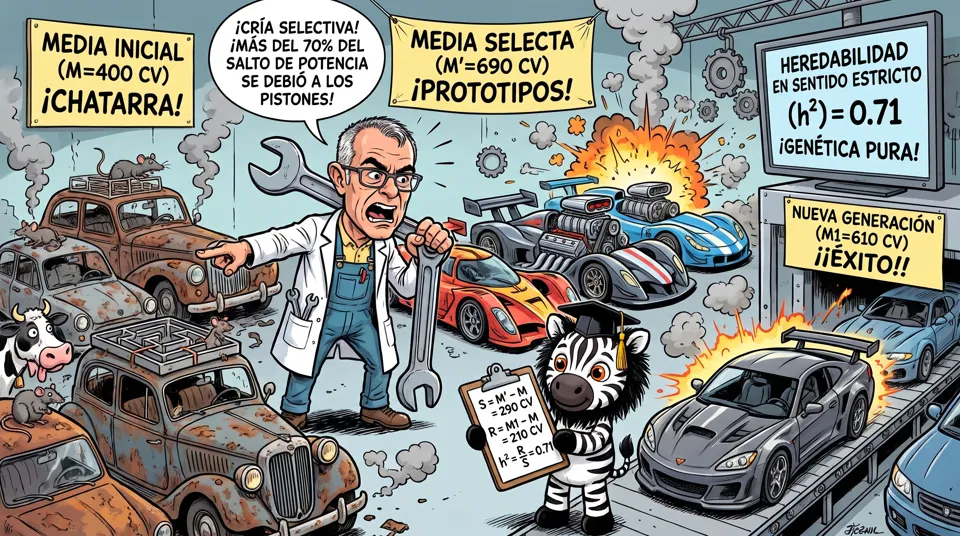
La media de la parrilla son cuatrocientos caballos de potencia ( M ). Decides subir el nivel.
Separas solo los ejemplares más potentes para cruzar sus motores.
La media de esos prototipos elegidos es de seiscientos noventa caballos ( M' )
A la resta entre la media de los vehículos elegidos para criar y la media de la flota inicial la llamamos Diferencial de selección.
Se representa con la letra S mayúscula (S).
S = M' - M
En nuestro taller, seiscientos noventa menos cuatrocientos nos da un diferencial de doscientos noventa caballos.
Es el margen de exigencia que has aplicado al elegir la cantera.
Ahora cruzas esos motores de élite entre ellos y mides a los descendientes.
La nueva generación da una media de seiscientos diez caballos en el banco de pruebas. No llegan al nivel de sus padres elegidos, pero han superado de largo a la chatarra inicial.
A la ganancia real de potencia de la nueva generación respecto al promedio del grupo original la llamamos Respuesta a la selección.
Se representa con la letra R mayúscula. (R)
R = M_1 - M
Restas seiscientos diez menos cuatrocientos. Tu respuesta a la selección es de doscientos diez caballos de mejora.
¿Cómo sabes si valió la pena el experimento?
Divides la respuesta alcanzada entre el diferencial que exigiste. R dividido entre S.
h^2 = R / S
Doscientos diez entre doscientos noventa. El resultado es cero coma setenta y uno.
Esa es la heredabilidad en sentido estricto de tu motor.
Significa que más del setenta por ciento del salto de potencia se debió a la genética pura de los pistones.
Si tras elegir los mejores coches la nueva camada rinde exactamente igual que la flota vieja inicial, tu respuesta a la selección es cero. La heredabilidad sería cero. Habrías malgastado el tiempo y la gasolina.
De esta parte de la teoría, poco más me queda decir. Haced muchos ejercicios prácticos de años anteriores, acostumbraros a lo enrevesado de la redacción de los problemas y no os asustéis por los relatos que se inventan para los problemas.
COMPONENTES DE LA VARIANZA GENÉTICA Y ESTUDIOS DE PARENTESCO | Averías en la Centralita y Cruce de Escuderías
Hasta ahora hemos asumido que los motores son piezas sencillas que se suman sin más.
Pero cualquier mecánico sabe que cuando metes componentes electrónicos modernos, las piezas empiezan a pelearse entre sí.
La varianza genética no es un bloque homogéneo de potencia.
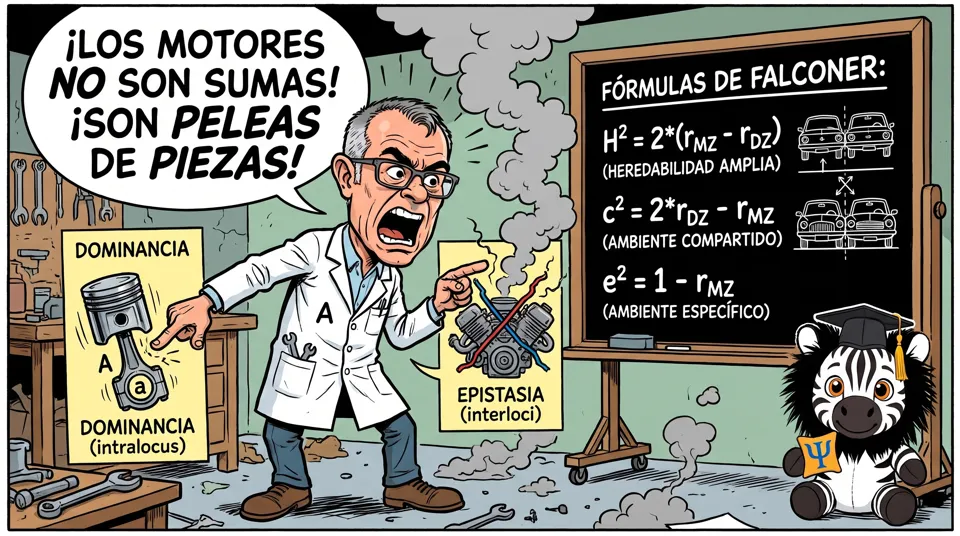
Para eso tenemos más numeritos: La Varianza por dominancia y la Varianza por epistasia.
La primera, la Varianza por dominancia, ocurre dentro de la misma casilla del motor. Es una interacción intralocus. Un alelo dominante le pisa el cuello al recesivo y decide la potencia a solas. Todo dentro la misma localización
La segunda, la Varianza por epistasia, es más traicionera: es una interacción interloci.
Un cable suelto en la centralita del control de tracción anula por completo los cuatrocientos caballos que habías ganado instalando un turbo nuevo. Ocurre entre distintas localizaciones
Si un motor es albino en el chasis, da igual lo bonita que sea la pintura que le diseñaste: la chapa saldrá blanca.
Las interacciones intralocus son aquellas que ocurren entre los alelos del mismo locus, como la dominancia completa, la codominancia y la herencia intermedia. Por el contrario, la epistasia es una interacción interloci.
Recuerda el latín que probablemente no estudiaste: locus, singular: una localización. Loci, plural: varias localziaciones
Por eso, cuando sumas la parte aditiva, la dominancia y la epistasia, obtienes la varianza genética total.
La heredabilidad en sentido amplio incluye todo este desmadre de interferencias.
La estricta, en cambio, solo se queda con los pistones aditivos limpios que pasan de padres a hijos. La correlación entre progenitores e hijos mide la heredabilidad en sentido estricto (h^2), ya que solo se hereda directamente entre generaciones la varianza genética aditiva.
Como en humanos no podemos cruzar pilotos a punta de pistola en el garaje para ver qué sale, tenemos que recurrir a la telemetría comparada. Estudiamos escuderías familiares.
Y los mejores casos se dan en Gemelos monocigóticos y Gemelos dicigóticos.
Los primeros, los gemelos monocigóticos, vienen de la misma chapa original dividida en dos.
Proceden de un único cigoto que, al dividirse, dio lugar a dos embriones distintos. Comparten el 100% de sus alelos, tanto aditivos como no aditivos.
Comparten el cien por ciento de la ingeniería. Mismo motor, misma centralita, misma dominancia y misma epistasia. Si rinden distinto en la pista, la culpa es solo del asfalto o del mecánico de boxes.
Los segundos, los gemelos dicigóticos, proceden de dos proyectos distintos fabricados el mismo día.
Proceden de la fecundación simultánea de dos óvulos por dos espermatozoides. Comparten el 50% de sus genes genéticos, igual que cualquier par de hermanos completos
Comparten la mitad de los pistones aditivos y apenas una cuarta parte de los trucos de dominancia.
Si pones a rodar a dos gemelos idénticos criados en la misma casa, comparten el motor y la gasolina.
¿Cómo diablos separas la potencia del coche del ambiente de la casa?
Pues, por si no lo has adivinado, con más numeritos. En este caso, con las Fórmulas de Falconer.
La premisa de Falconer es lógica: si asumimos que ambos tipos de gemelos criados juntos comparten el mismo ambiente familiar, cualquier parecido extra que manifiesten los gemelos monocigóticos frente a los dicigóticos se debe puramente a ese 50% de genética adicional que los primeros comparten.
El bueno de Falconer diseñó una fórmula magistral.
Para calcular la heredabilidad en sentido amplio, que es la proporción de la varianza fenotípica total explicada por las diferencias genéticas totales entre los individuos, resta la correlación de los gemelos distintos a la de los idénticos y multiplica la diferencia por dos.
Al restar la correlación de los dicigóticos a la de los monocigóticos, eliminas el efecto del ambiente compartido
Ache mayúscula al cuadrado es igual a dos por la diferencia entre r de monocigóticos y r de dicigóticos.
H^2 = 2* (𝑟𝑀𝑍−𝑟𝐷𝑍)
Así de un plumazo eliminas el efecto del garaje compartido.
¿Quieres saber cuánto influye haber crecido en la misma escudería comiendo la misma sopa?
Calculas el ambiente compartido, c al cuadrado, Es la fracción de la varianza fenotípica debida a los factores ambientales comunes experimentados por crecer en un mismo entorno familiar.
Para ello multiplicas por dos la correlación de los dicigóticos y le restas la de los monocigóticos.
c^2 = 2*𝑟𝐷𝑍 - 𝑟𝑀𝑍
¿Y si quieres medir las imprudencias individuales que comete cada piloto por separado?
Representa la proporción de la varianza explicada por las experiencias ambientales únicas e individuales que no se comparten con la familia (las imprudencias de un solo piloto). Dado que los gemelos MZ tienen genes idénticos y un ambiente familiar idéntico, cualquier diferencia biológica o conductual entre ellos —es decir, lo que falta para que su correlación sea perfecta (1)— tiene que deberse al ambiente no compartido
Por eso eestas a uno la correlación de los gemelos idénticos.
Eso te da e al cuadrado: la ambientalidad específica. El bache que solo pisó el coche número uno:
e^2 = 1 - 𝑟𝑀𝑍
Si los gemelos idénticos se parecen muchísimo más entre sí que los hermanos normales, ¿a qué se debe la ventaja? A que comparten la totalidad de la arquitectura genética, y con la matemática de Falconer podemos restar el ruido del circuito para medir la potencia exacta del motor.
Las fórmulas de Falconer se utilizan en estudios de gemelos para estimar la heredabilidad (H^2) y la ambientalidad (compartida (c^2) o específica (e^2))
Para esto que acabamos de ver, la misma recomendación: Mucho ejercicio práctico
GENÉTICA CUANTITATIVA DE LA CONDUCTA HUMANA | La Telemetría del Humano: Motores V12 y Averías Críticas
Toca dejar de jugar con ratas en laberintos y sacar la telemetría a la pista humana.
Nos fascina medir el Cociente de Inteligencia como si fuera la potencia neta escupida por un V12 en el banco de pruebas.
En realidad, y esto no viene en el libro, el CI es un numerito que representa una foto fija, tomada en un escenario concreto a una persona determinada en un momento específico.
Eso es el puñetero CI, por desgracia, la mejor de las herramientas que se le han ocurrido a la psicología científica básica para determinar la inteligencia de un sujeto.
¿La mayor crítica? Qué me parece un poco soberbio operativizar un constructo tan complejo en apenas un puñado de variables y encima meter en el mismo saco a la velocidad de procesamiento y a la memoria de trabajo que tienen un funcionamiento totalmente diferente al resto de variables que mide un test psicométrico de CI.
El resultado es un numerito que pretende medir el desempeño de una persona en unas áreas concretas y que además se ve penalizado porque se comparan la memoria de trabajo y la velocidad de procesamiento con el resto de la población.
Seguramente comprobaréis en el futuro que en el fondo no es más que un negocio de las empresas que los venden.
Aunque creo que mejor me callo, porque aquí estamos con Psicobiología y esto no lo podéis poner en el examen por si acaso.
Pero tengo que aliviar la disonancia que me produce tener que estudiar paradigmas caducos y obsoletos, que desembocan en desatención a los habitantes del barrio del Prejuicio Envidioso.
Sigamos.
La media de la inteligencia de la población está calibrada en cien caballos y la desviación típica es de quince.
Si tu informe dice que estás en percentil noventa y ocho, la cifra no te hace superior por gracia divina.
Solo significa que de cada cien trancanueces que circulan por la autopista, tu motor empuja más que noventa y ocho de ellos.
Pero, ¿cuánta de esa velocidad se debe al motor que traías de serie y cuánta a la gasolina de aviación que te pagaron tus padres?
Para resolver el misterio sin clonar personas en un laboratorio secreto, la ciencia tuvo que ponerse creativa
Los experimentos donde se analiza el rendimiento de un motor sacado de su fábrica original y montado en el chasis de otra escudería ajena se denominan Estudios de adopción.
Los datos son fríos y bastante demoledores para la pedagogía moderna y progre.
Un hijo adoptado puede crecer en el garaje de un multimillonario, recibir gasolina de noventa y ocho octanos y aditivos ultrasónicos.
Si sus padres biológicos tenían la potencia de un cortacésped, su rendimiento final en la pista se parecerá ridículamente al del cortacésped.
La correlación entre el chico y sus padres adoptivos en el indicador intelectual rasca el cero.
Vuelvo a interrumpir. Y aunque como acabamos de ver, esto esta científicamente demostrado, aún hay medios que insisten en que las diferencias de inteligencia y de rendimiento en el informe PISA se deben a la clase social de los alumnos. A estos les invitaría yo a darse cuenta de que es perfectamente compatible tener una inteligencia muy por encima de la media sin saber ni siquiera leer y escribir. Quizás se debe a algún sesgo, como el hecho de que, posiblemente, ocupen el puesto que ocupan por ser hijos de alguien en lugar de por el equipamiento que traían de serie.
Demasiada disonancia acumulada, vamos a continuar. Porque aquí viene el giro que desquicia a los defensores del ambiente ideal.
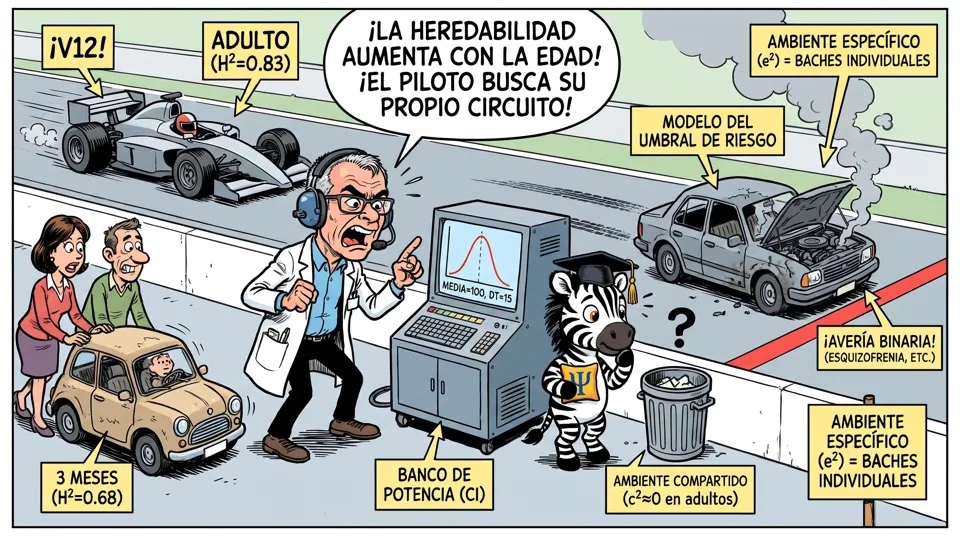
Al fenómeno por el cual la influencia de los genes sobre la potencia aumenta conforme pasan los años lo llamamos: Heredabilidad de la inteligencia con la edad.
Ya noto como se empieza a llenar otra vez el depósito de disonancia
A los tres meses de vida, la heredabilidad ronda un escaso cero coma sesenta y ocho. A los quince años salta a cero coma ochenta y tres. En la madurez, la cifra se consolidará aún más arriba. ¿Por qué ocurre esto?
Porque cuando eres un coche de juguete, tus padres te llevan por la carretera que ellos eligen. Pero en cuanto el piloto toma el volante y se independiza, busca activamente los circuitos, el asfalto y las curvas que encajan con la potencia real de su V12.
Los estudios actuales demuestran que la heredabilidad de la inteligencia se incrementa progresivamente con la edad, debido a que los individuos buscan de forma activa ambientes concordantes con su genotipo. No voy a hacer comentarios.
A las ventajas derivadas de compartir la decoración, los mecánicos y la calefacción del mismo garaje familiar la llamamos Ambientalidad compartida.
Se representa como c al cuadrado.
En adultos, la ambientalidad compartida para la inteligencia cae prácticamente a cero. No te pareces a tu hermano por haber comido los mismos macarrones los domingos.
La variación que no explican los genes se debe a algo mucho más caótico.
Nos referimos a las vivencias únicas, los baches individuales y las piedras que solo golpean tu cárter, lo que se califica como Ambientalidad específica.
Se representa como e al cuadrado.
Por otro lado, según los estudios de genética cuantitativa del manual, el trastorno del espectro autista presenta una heredabilidad del riesgo extremadamente alta, alcanzando un valor aproximado de 0,90.
Además, diversas investigaciones en genética cuantitativa humana indican que los rasgos amplios de personalidad, actitudes y tendencias psicológicas (como la religiosidad, la orientación sexual o el conservadurismo) presentan una heredabilidad moderada en torno al 40% (0,40).
Ahora bien, ¿qué pasa cuando la máquina no solo es más lenta o más rápida, sino que directamente rompe el motor en mitad de la carrera? Hablamos de psicopatologías.
La esquizofrenia, la depresión bipolar o el trastorno obsesivo-compulsivo no se presentan en escala continua de tonos de gris. O el coche anda, o está echando humo a un lado de la pista.
Para explicar cómo multitud de genes aditivos provocan un fallo binario tan drástico se inventó un truco matemático.
A la teoría que establece que los alelos de riesgo van sumando micro-averías invisibles hasta que el motor sobrepasa una línea roja insostenible se le llama Modelo del Umbral de Riesgo.
Tú puedes acumular tres, cuatro o diez piezas defectuosas en la centralita sin notar nada. Tu coche sigue rodando.
Pero en cuanto sumas el alelo número doce, la máquina cruza el umbral crítico, salta la biela por el costado y terminas diagnosticado en el taller de psiquiatría.
En la esquizofrenia, si tu gemelo idéntico ha reventado el motor tras cruzar ese umbral, tu probabilidad de sufrir exactamente la misma avería se dispara casi al cincuenta por ciento.
¿Por qué tu inteligencia adulta y tus probabilidades de sufrir una avería mental dependen tan poco del ambiente donde te criaron? Porque la heredabilidad aumenta con la edad mientras la ambientalidad compartida se disuelve, dejando tu rendimiento a merced del valor genotípico acumulado y el Modelo del Umbral de Riesgo.
Recapitulación del Taller
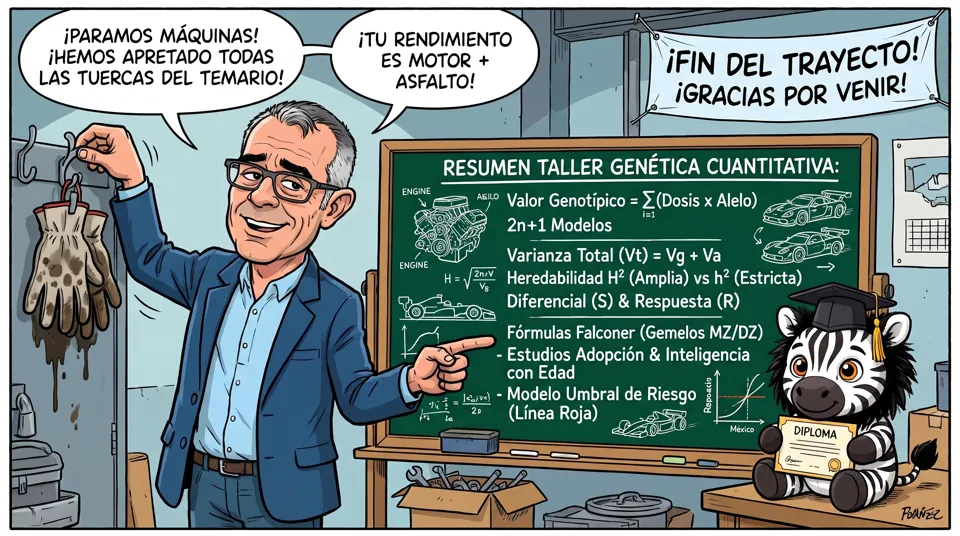
Paramos las máquinas.
Me quito los guantes llenos de grasa y el mono de jefe de mecánicos.
Ha sido un viaje intenso por las tripas de la genética cuantitativa.
Te prometí en la bienvenida que no nos dejaríamos ni una sola tuerca del temario por apretar y aquí tienes la prueba sobre la mesa de trabajo.
Empezamos desmontando el mito mendeliano del interruptor simple.
Aprendimos que la potencia real en la pista no depende de un único botón mágico. Contamos piezas.
Multiplicamos la Dosis génica por la potencia individual de cada alelo aditivo para calcular el Valor genotípico.
Y aplicamos la fórmula de dos n más uno para predecir cuántos modelos de coche podían salir de la línea de montaje.
Después sacamos los escáneres de telemetría masiva para rastrear los loci de Rasgo Cuantitativo.
Esas coordenadas diminutas escondidas en el manual.
Comprendimos que el cronómetro de la pista registra una Varianza Fenotípica Total.
Un tiempo global que se divide entre los caballos puros del motor y el agarre del asfalto.
Pero no confundas la potencia total del bloque con la fuerza que se transmite a la carretera.
La Heredabilidad en sentido amplio mide toda la varianza genética posible, sumando turbos, dominancias e interferencias electrónicas.
En cambio, la heredabilidad en sentido estricto solo cuenta los pistones aditivos limpios.
Es la única que le importa al preparador de escuderías cuando calcula el Diferencial de selección y la Respuesta a la selección para criar la siguiente generación de bólidos.
Cuando nos enfrentamos al desafío humano, recurrimos a las comparaciones entre escuderías familiares.
Usamos las fórmulas de Falconer.
Restamos la correlación entre gemelos distintos a la de los idénticos.
Así aislamos la heredabilidad real, borramos el peso de la ambientalidad compartida y medimos la ambientalidad específica de los baches individuales.
Comprobamos con los estudios de adopción que el garaje donde te cían no decide tu velocidad.
La heredabilidad de la inteligencia sube con los años porque el piloto termina buscando los circuitos que encajan con su motor.
Y ante las patologías mentales más graves, saltó el modelo del Umbral de Riesgo.
Esa ecuación donde acumulas micro-fallos invisibles en la centralita hasta que la máquina cruza la línea roja y revienta en mitad de la carrera.
Ya puedes entender que tu rendimiento en la vida no es un misterio místico ni un castigo del destino, sino la interacción matemática entre el valor genotípico de tu motor y la calidad del asfalto por el que decidas rodar.
Despedida
Dejas caer la la llave inglesa sobre la mesa de metal fundido.
El golpe seco resuena en el garaje vacío mientras el motor sobre el banco de pruebas empieza a enfriarse.
Escuchas el chasquido metálico del bloque reduciendo su temperatura. Un crujido sutil que parece marcar la cuenta atrás de tus propios componentes.
Te miras las manos. Grasa negra incrustada en las líneas de la piel. Suciedad dura que no sale ni con disolvente industrial.
Llevas años obsesionado con la telemetría. Calculando el valor genotípico de cada frustración. Midiendo la varianza de tus insomnios a las tres de la mañana. Queriendo justificar cada frenada a destiempo porque el asfalto de tu infancia estaba mojado o porque te faltó un pistón aditivo en la cadena de montaje.
Es una anestesia intelectual muy cómoda. Explicar tu miseria mediante la curva normal te libera de la culpa. Pero no arregla la transmisión reventada.
Sales a la calle. El aire frío de la noche te sacude la cara como un bofetón helado. Miras el tráfico de la avenida.
Decenas de latas de chapa rodando en caravana hacia el mismo desguace. Pisando el embrague por pura inercia. Ajustándose a la velocidad media de la masa para no rozar la pintura con el vecino.
La inercia devora a los mediocres y también a los que se creían especiales por llevar un V12 bajo el capó.
Te metes las manos tiritando en los bolsillos de la chaqueta. El reloj de la iglesia marca otra hora muerta. Cada segundo es una gota de combustible que se quema en punto muerto. Consumiendo el depósito sin moverte un solo metro del bordillo. Tu motor se desgasta igual si ganas la carrera que si te quedas oxidándote en el arcén. El tiempo no devuelve las vueltas de calentamiento.
Te quedas solo en la acera, masticando tu propia respiración. Sabes que antes de que la vida pase en blanco, antes de que el chasis ceda bajo la fatiga del material, necesitas un lugar donde diseccionar este mapa de averías sin edulcorantes.
Por eso existe diariodeunacebra.com, esa trastienda a oscuras donde desarmamos la ilusión del control pieza por pieza antes de que el motor se apague del todo. Recuerda siempre que el cronómetro de la pista sigue corriendo aunque tú decidas no arrancar.
Si te apetece nos vemos en el próximo capítulo en el que trataremos de explicar la teoría de la evolución como si la naturaleza fuera una multinacional de Selección de Personal y Recursos Humanos llamada «Evolución & Asociados».
Los organismos serán los candidatos que entregan su currículum vitae (el fenotipo) redactado a partir de sus títulos y competencias genéticas internas (el genotipo).
Las mutaciones serán erratas o habilidades estrafalarias en el currículum, y la selección natural es el proceso de contratación y despidos masivos del Departamento de RRHH según las exigencias del mercado laboral.
Hasta entonces, muchas gracias por tu compañía